Alan: Biyokimya · Düzey: İleri IBO
Moleküler mekanizma
Enzimler aktivasyon serbest enerjisini düşürerek reaksiyon hızını değiştirir; ΔG değerini ve denge sabitini değiştirmez. Aktif bölge statik bir kalıp değildir: yan zincirlerin protonlanması, geçiş hâli stabilizasyonu, kofaktörlerin kullanımı ve çözücünün yeniden düzenlenmesi katalize katılabilir. İndüklenmiş uyum kavramı, bu dinamik sürecin bir örneğidir. Enzim katalizinde hız ile termodinamik elverişlilik birbirinden ayrı değerlendirilmelidir.
Tek substratlı E + S ⇌ ES → E + P şemasında, ES kompleksinin yaklaşık durağan durumda olduğu koşullarda v₀=Vmax[S]/(Km+[S]) elde edilir. Burada Vmax=kcat[E]toplam ve Km=(k−1+kcat)/k1'dir. Km bağlanma ayrışma sabitine ancak ek varsayımlar altında yaklaşır; her durumda doğrudan 'afinite' değildir. [S]=Km olduğunda v₀=Vmax/2; [S]≪Km olduğunda hız yaklaşık (kcat/Km)[E][S] olur. kcat birimi s⁻¹; kcat/Km birimi M⁻¹ s⁻¹'dir.
İnhibisyon modelleri
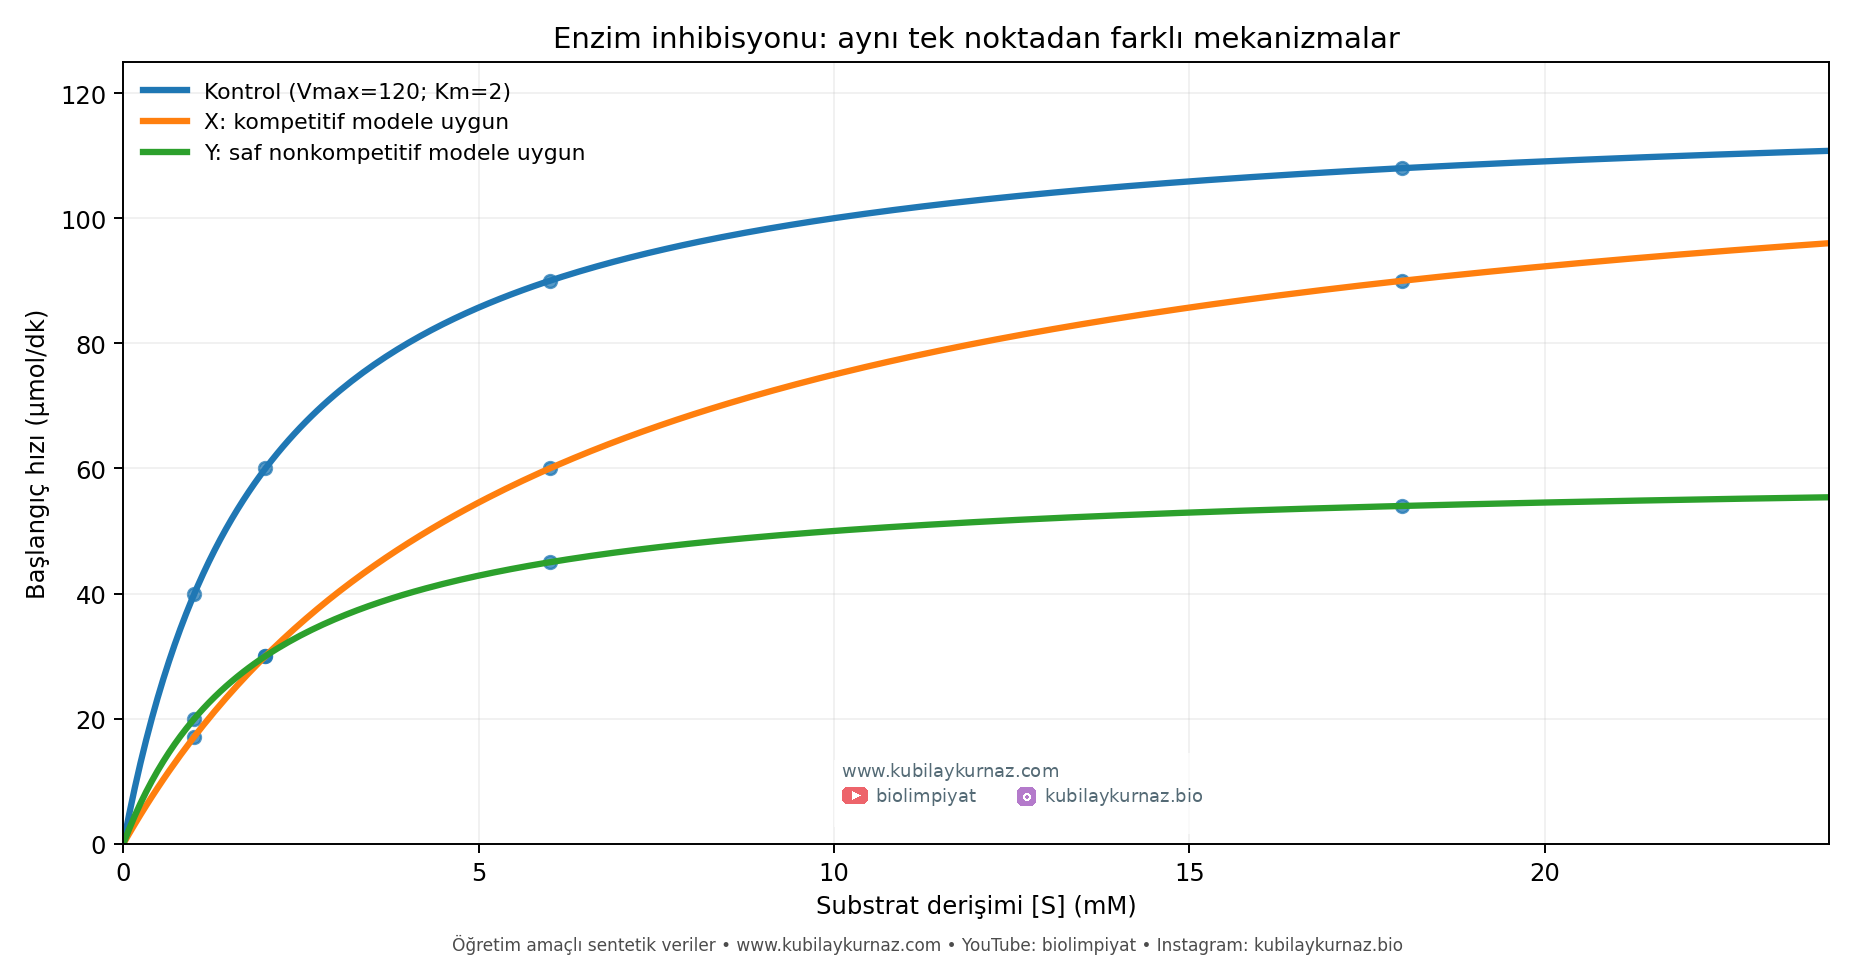
Klasik kompetitif model görünür Km'yi artırır, Vmax'ı değiştirmez. Saf nonkompetitif inhibisyon görünür Vmax'ı azaltır, Km'yi değiştirmez. Unkompetitif modelde görünür Km ve Vmax birlikte azalır; karışık inhibisyonda iki parametre farklı oranlarda değişebilir. Gerçek inhibitörler yavaş bağlanma, geri dönüşümsüz etki veya agregasyon gösterebileceğinden her veri tek bir modele zorla uydurulmamalıdır. Lineweaver–Burk dönüşümü düşük [S] ölçümlerinin hatasını büyütür; uygun durumda doğrusal olmayan parametre tahmini daha savunulabilir.
Özgün sentetik veri
Veriler öğretim amacıyla kurgulanmıştır; gerçek IBO sorusundan veya bilimsel makaleden alınmamıştır.
| [S] (mM) | Kontrol hızı | X ile hız | Y ile hız |
|---|---|---|---|
| 1 | 40,0 | 17,1 | 20,0 |
| 2 | 60,0 | 30,0 | 30,0 |
| 6 | 90,0 | 60,0 | 45,0 |
| 18 | 108,0 | 90,0 | 54,0 |
Hızlar µmol/dk'dır. Kontrol için Vmax=120, Km=2 mM; X için Vmax=120, Km=6 mM; Y için Vmax=60, Km=2 mM değerleri verilere uygundur. İnhibitörler [S]=2 mM'de aynı hızı verse bile aynı mekanizmaya sahip oldukları sonucuna varılamaz. [S]=10 mM için vX=120×10/16=75, vY=60×10/12=50 µmol/dk tahmin edilir.
Deney tasarımı, kontrol ve sınırlar
İlk hız, substrat tükenmesi ve ürün birikimi önemsizken ölçülmelidir. Enzim miktarı, sıcaklık, pH ve iyon şiddeti sabitlenmelidir. Çözücü kontrolü ve inhibitörün ölçüm dalga boyunda absorbans testi yapılmalıdır. Tek bir substrat derişiminde düşen hız, inhibisyon tipi hakkında kesin bilgi vermez. Bağımsız biyolojik tekrar ile aynı numunenin tekrarlı okuması birbirine karıştırılmamalıdır.
Çözümlü IBO tipi soru
Soru: Tabloya göre hangi çıkarım en güçlüdür? A) X enzimi geri dönüşümsüz parçalamıştır. B) Y yalnız aktif bölgeye bağlanır. C) X kompetitif, Y saf nonkompetitif modelle tutarlıdır. D) Bağlanma bölgeleri kesin tanımlanmıştır. E) X'in Vmax'ı yarıya düşmüştür.
Cevap: C. X'in yüksek substratta kontrolün Vmax değerine yaklaşması, Y'nin ise daha düşük bir sınır hızı göstermesi kinetik modelleri ayırır. Ancak bir modele uyum, moleküler bağlanma yerinin doğrudan kanıtı değildir.
İleri kaynak: https://openstax.org/books/biology-2e/pages/6-5-enzymes
Derin IBO eki — hız denkleminin türetilmesi
ES kompleksi için kütle dengesi d[ES]/dt=k₁[E][S]−(k₋₁+kcat)[ES] şeklindedir. Durağan-durumda sol taraf yaklaşık sıfırdır. Serbest enzim derişimi [E]=[E]toplam−[ES] yerine konup düzenlendiğinde [ES]=[E]toplam[S]/(Km+[S]) bulunur. Ürün oluşum hızı kcat[ES] olduğundan Michaelis–Menten bağıntısı çıkar. Durağan-durum, kimyasal denge anlamına gelmez: ürün oluşumu devam ederken ES havuzu kabaca kararlı kalır.
Başlangıç hızı kullanılan deneylerde substrat derişimi belirli bir kısa zaman aralığında yaklaşık sabit varsayılır. Enzim miktarı çok yüksekse substratın önemli bir kısmı ES kompleksine bağlanıp 'serbest substrat' ile 'toplam substrat' farkı yaratabilir. Bu durumda basit denklem yeterli değildir. Benzer şekilde kooperatif veya çok substratlı enzimlerin her biri zorla tek-substrat Michaelis–Menten eğrisine uydurulmamalıdır.
Kompetitif ve karışık inhibisyonun genel formu
Klasik tersinir karışık inhibitör modelinde v=Vmax[S]/(αKm+α′[S]) yazılabilir. Burada α=1+[I]/Ki serbest enzime bağlanmanın, α′=1+[I]/Ki′ ES kompleksine bağlanmanın etkisini parametrik olarak anlatır. Kompetitif inhibisyonda α>1 ve α′=1; unkompetitifte α=1 ve α′>1; saf nonkompetitifte α=α′>1 olur. Böylece Vmax,gör=Vmax/α′ ve Km,gör=αKm/α′ elde edilir.
Örneğin [I]=10 µM'de görünür Km kontrolün üç katı, Vmax aynıysa α=3, α′=1 ve basit kompetitif model altında Ki=[I]/(α−1)=10/2=5 µM çıkar. Bu hesap inhibitörün serbest derişiminin 10 µM olduğuna, tersinir basit bağlanmaya ve enzimin inhibitör miktarına göre düşük olduğuna dayanır. Çok güçlü bağlanan inhibitörlerde önemli miktar inhibitör enzime bağlanacağından toplam [I] yerine serbest [I] gerekebilir. Her IC50 değeri Ki değildir; IC50 substrat derişimi ve deney modeline bağlıdır.
Ölçüm ve model seçimi
Ürün oluşumuna dayalı bir testte ilk 15, 30, 45 ve 60 saniyede ürün miktarları sırasıyla 0,45, 0,89, 1,32 ve 1,75 µmol olsun. Yaklaşık doğrusal ilk hız eğimi (1,75−0,45)/45 s ≈0,0289 µmol/s, yani 1,73 µmol/dk olur. Fakat verinin ilk ölçümü kaçırılmış olabilir; en erken doğrusal aralıktaki ölçümlere doğrusal regresyon uygulayıp artıkların zamanla sistematik değişip değişmediği incelenmelidir. Başlangıç absorbansı sıfır kabul edilmeden önce kör örnek ve sıfır-zaman okuması kontrol edilmelidir. Ürün miktarı zamanla eğrilik gösteriyorsa tek uzun aralığın ortalama eğimini 'başlangıç hızı' diye almak hatalı olabilir.
Bir modelin verilere iyi uyduğunu söylemek için yalnız R²'ye bakmak yetmez. Tekrarlı ölçümlerin hata dağılımı, kalıntıların rastgeleliği, parametre güven aralıkları ve alternatif modellerin yakın açıklama gücü karşılaştırılır. Düşük substrat bölgesindeki hata Km tahminini özellikle etkileyebilir. Deney birimlerinin bağımsız olması gerekir.
İleri özgün sorular ve çözümleri
Soru A. Substrat derişimi Km'nin 9 katıysa v/Vmax kaçtır? Çözüm: 9Km/(Km+9Km)=0,9. 'Doygunluğa yaklaştı' ifadesi Vmax'a tam ulaşıldığını göstermez.
Soru B. Vmax=100 µmol/dk ve enzim toplam miktarı 0,02 µmol ise kcat kaç dk⁻¹'dir? Çözüm: 100/0,02=5000 dk⁻¹, yani yaklaşık 83,3 s⁻¹. Boyut analizi doğru yapılmalıdır.
Soru C. Bir enzimde Km düşerken Vmax da düşüyorsa bunun saf kompetitif inhibisyon olduğu söylenebilir mi? Çözüm: Hayır. Klasik saf kompetitif model Vmax değişmezliğini öngörür; unkompetitif, karışık veya enzim miktarının değiştiği bir durum değerlendirilmelidir.
Soru D. Bir inhibitörün baskılama etkisi, karışıma daha fazla substrat ekleyince azalmıyor. Bu sonuç onun mutlaka geri dönüşümsüz olduğunu kanıtlar mı? Çözüm: Hayır. Saf nonkompetitif, karışık, unkompetitif inhibisyon ve başka kinetik/sinyal bozucu etkiler de benzer patern oluşturabilir.
Soru E. Aynı deneyde iki farklı inhibitör, tek bir substrat derişiminde aynı hız düşüşü oluşturuyor. Hangisi daha bilgilendirici ek çalışmadır? Çözüm: Geniş bir substrat derişimi serisinde, sabit farklı inhibitör dozlarıyla başlangıç hızlarını ölçüp ortak bir model çerçevesinde parametreleri kestirmek. Yapısal bağlanma konumunu doğrulamak için bağımsız biyofiziksel/yapısal deneyler de gerekebilir.